


Будова та властивості ферментів
Ферменти - біологічні каталізатори, які за природою своєї будови являються білками, отже мають непросту будову.В цій статті ми розберемо яку роль ферменти грають в нашому організмі, що таке каталіз, загальну будову ферментів та механізми каталізу
Каталіз
Каталіз - хімічне явище, сенс якого полягає в тому, що змінюється швидкість реакції внаслідок додавання в середовище якогось каталізатора, який в свою чергу може бути органічним(біологічним) та неорганічним.
Фермент - біологічний каталізатор, ось і все.
Каталізатор - це хімічна речовина, яка пришвидшує реакцію, але не руйнується/витрачається в процесі цієї реакції.
Всі ферменти представлені білками, а білки, як ми знаємо, синтезуються лише в живих організмах(органічно), ось чому це біологічний/органічний каталізатор.
Суть каталіза
Це ключовий пункт у всій цій повісті.
Якщо ми візьмемо живий організм, то побачимо що він наповнений різними молекулами, які реагують між собою, але ця реакція в основному забезпечується наявністю ферментів.Чому ми не можемо просто взяти молекулу І та молекулу ІІ і зробити з них один продукт, не маючи при цьому ніякого каталізатора? Що нам заважає?
Справа в тому, що кожна реакція має енергетичний бар'єр, який потрібна подолати, щоб реакція відбулась.
Кожна молекула має свій певний енергетичний рівень, який залежить від багатьох факторів:
- Тиск(чим більше тиск, тим більше енергетичний рівень)
- Температура навколишнього середовища(чим більше температура, тим більше енергетичний рівень)
- pH(на кожну молекулу впливає по-різному)
Якщо ми візьмемо просто глюкозу і АТФ при температурі 3 градуса по цельсію , то вони не провзаємодіють, так як сума їх енергетичних рівнів не перевищує енергетичний бар'єр реакції(грубо скажемо, що енергетичний бар'єр данної реакції = 500 Джоулів, а сума їх енергетичних рівнів = 350 Джоулів).А ось коли ми додамо каталізатор(ту ж саму гексокіназу), то данний фермент провзаємодіє з цими субстратами та зменшить енергетичний бар'єр данної реакції(ну скажемо, що тепер він буде = 300 Джоулів), внаслідок чого вони прореагують між собою.
Будова ферментів
Білки, як ми знаємо поділяють на:
- Прості
- Складні
Фермент також являється білком, значить ферменти також поділяють на:
- Прості
- Складні(холоферменти)
Прості ферменти представлені лише молекулами білків, там немає ніяких "домішок": вуглеводів, іонів, вітамінів, тощо. Складні ферменти представлені як молекулою білку(апофермент) та якоюсь небілковою додатковою групою - кофермент, кофактор, простетична група, всі ці терміни являються синонімами, однак, якщо ця додаткова група представлена вітаміном або його похідним - то ми частіше всього називаємо її коферментом, якщо іоном металу - кофактором.Терміни кофермент та кофактор використовуються тоді, коли наш фермент потребує цю додаткову групу тільки лише тоді, коли протікає реакція, а ось наприклад, якщо ця додаткова група дуже тісно зв'язана з ферментом(навіть тоді, коли фермент нічого не каталізує), то ми її називаємо простетичною групою.
Субстрат - речовина, яка взаємодіє з ферментом, в результаті чого ми отримуємо якийсь продукт реакції(наприклад: для ферменту гексокіназа субстратом являється глюкоза, коли вони провзаємодіють між собою, то субстрат перетвориться в продукт - глюкоза-6-фосфат, а фермент як був так і залишиться незмінним).
Фермент має:
- Активний центр(наявний у ВСІХ ферментів)
- Алостеричний центр(наявний не у всіх ферментів)
Активний центр - це частина фермента, яка зв'язується з субстратом та каталізує його перетворення в продукт, відповідно до цього, активний центр складається з двох частин:
- Якорний центр зв'язує фермент з субстратом
- Каталізуючий центр відповідає за каталіз

Тут важливо зрозуміти, що активний центр складних білків не працює без коферментів.
Алостеричний центр - це частина фермента, яка зв'язується з регулятором(активатором, інгібітором) та таким чином регулює активність активного центру, наприклад: беремо ту ж саму гексокіназу, яка продукує глюкозу-6-фосфат - продукт діяльності цього ферменту являється його ж інгібітором(так працює немала кількість ферментів), тобто ця молекула(глюкоза-6-фосфат) зв'язується з алостеричним центром гексокінази, що призводить до просторових змін молекули фермента(білка), що в свою чергу впливає на активний центр, таким чином інгібуючи його.
Механізм взаємодії ферменту з субстратом
Механізми та стадії каталізу
Є два механізми каталізу:
- Кислотно-основний каталіз: в активному центрі фермента(а саме в каталітичній ділянці) знаходяться певні амінокислоти, які мають певні функціональні групи, які в свою чергу слугують донорами(-COOH, -NH3+, -SH)/акцепторами(-COO-,-NH2,-S-) електронів для субстрата
- Ковалентний каталіз: ферменти об'єднуються з субстратами міцним ковалентним зв'язком, внаслідок чого відбуваються внутрішньомолекулярні перебудови, внаслідок чого змінюється будова субстрата та утворюється продукт реакції
Тепер будемо розглядати загальне рівняння та стадії реакції.
- І стадія.Зв'зування ферменту(а саме його активного центру) з субстратом, внаслідок чого утворюється фермент-субстратний комплекс
- II стадія.Фермент реагує з субстратом, але утворюється не продукт реакції, а проміжний продукт реакції(таких продукт може бути декілька - ESx, ESxx), хоча іноді утворюється відразу продукт реакції без наявності проміжного
- ІІІ стадія.Проміжні продукти(якщо такі були наявні) перетворюються в продукт реакції, які відщеплюються від активного центру фермента і ми маємо вільний продукт реакції(P) та вільний фермент(S), який знову готовий каталізувати нові реакції

Типи реакцій
Коли ми розібрали детальну будову ферменту та механізми взаємодії субстрату з ним, можна переходити до типу ферментативних реакцій.
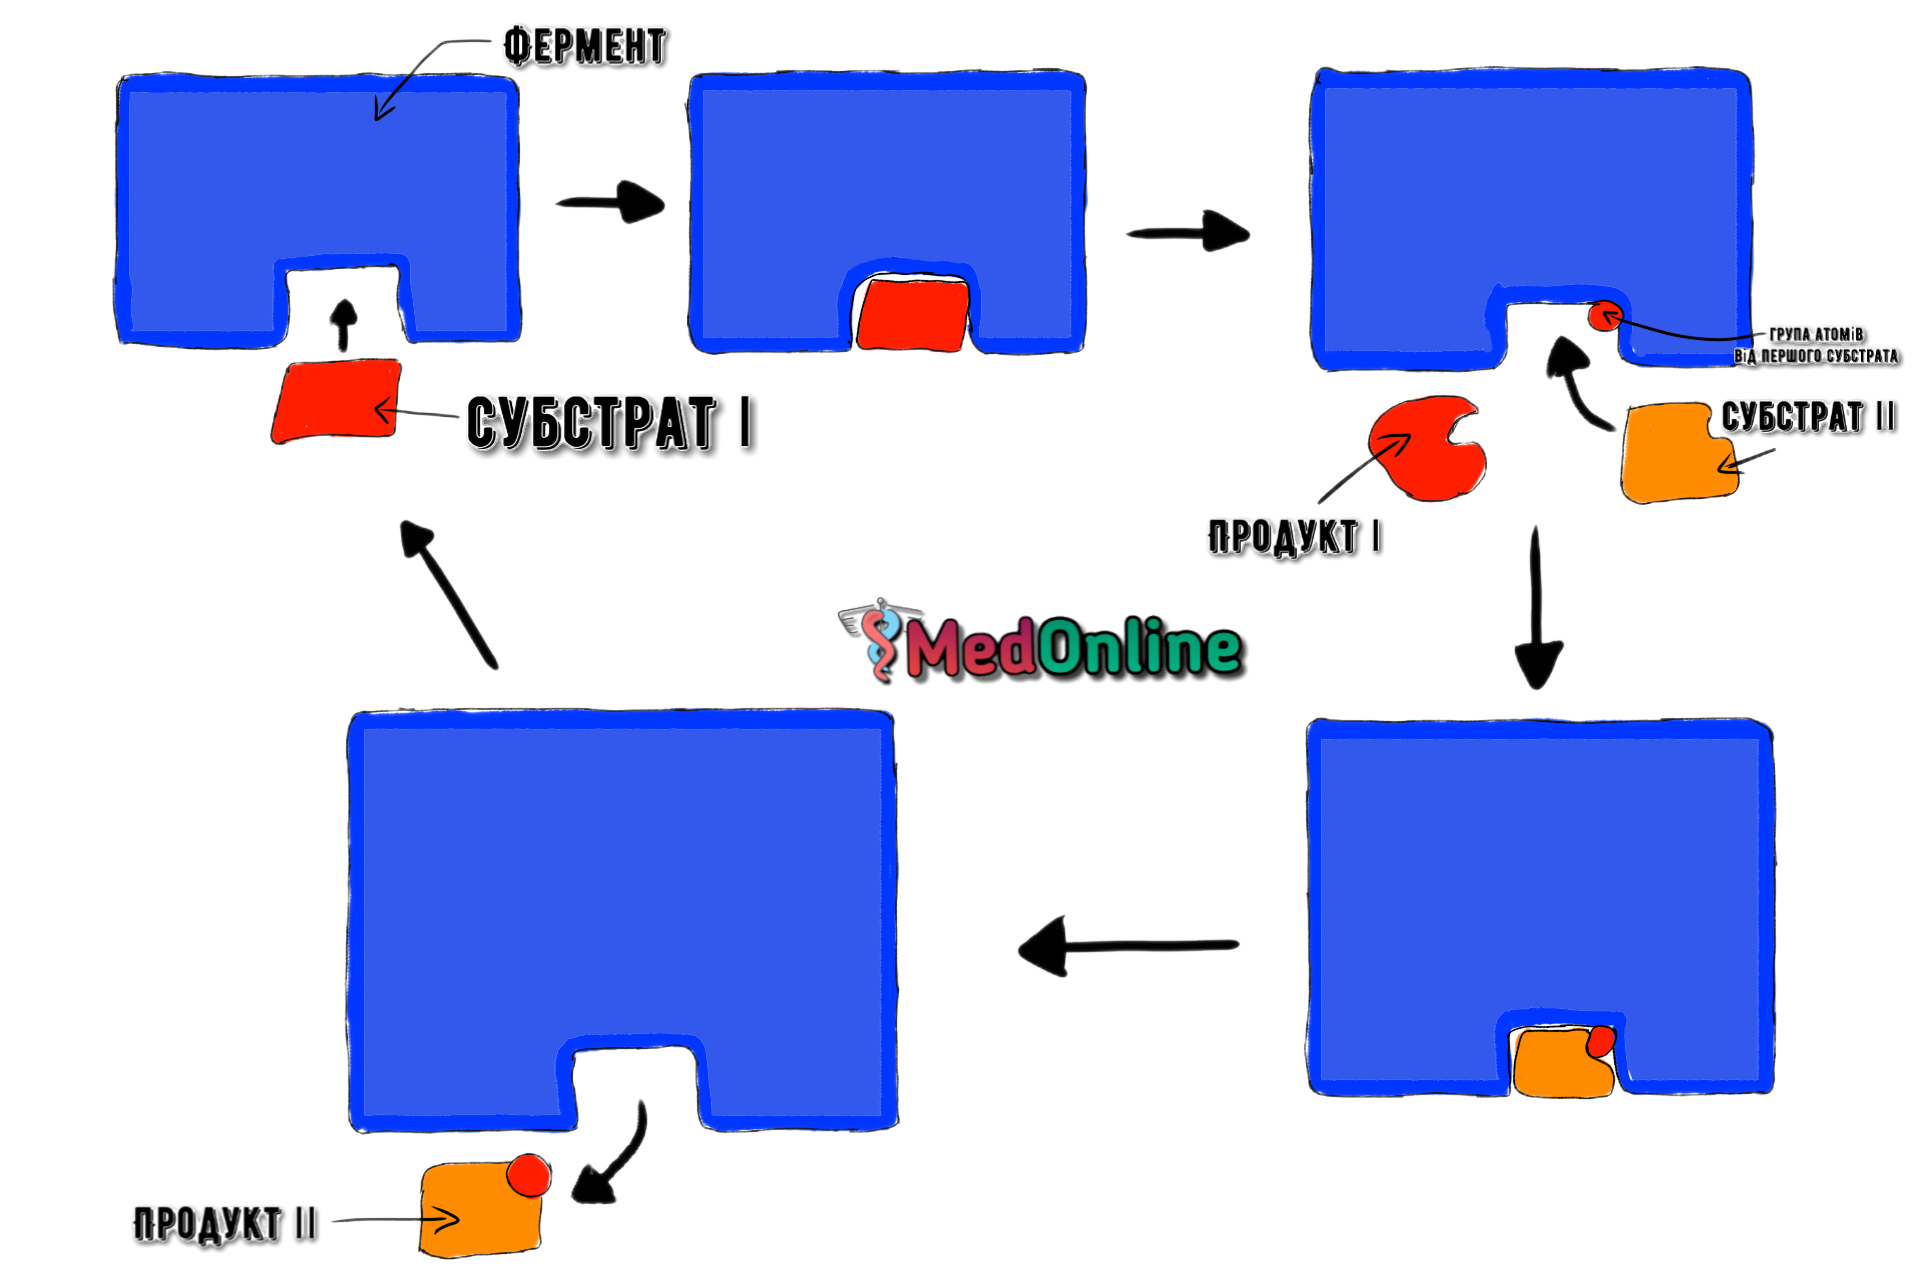
Тип Пінг-понг: ми маємо два субстрата - А і Б, та фермент(E).Фермент приєднує субстрат А та забирає у нього якусь функціональну групу, після чого відщеплює цей субстрат від себе у видозміненому вигляді - продукт реакції І(один), але ця функціональна група залишається з ферментом.Далі фермент приєднує субстрат Б та віддає йому цю функціональну групу і знову відщеплює його у вигляді продукту реакції ІІ(два).
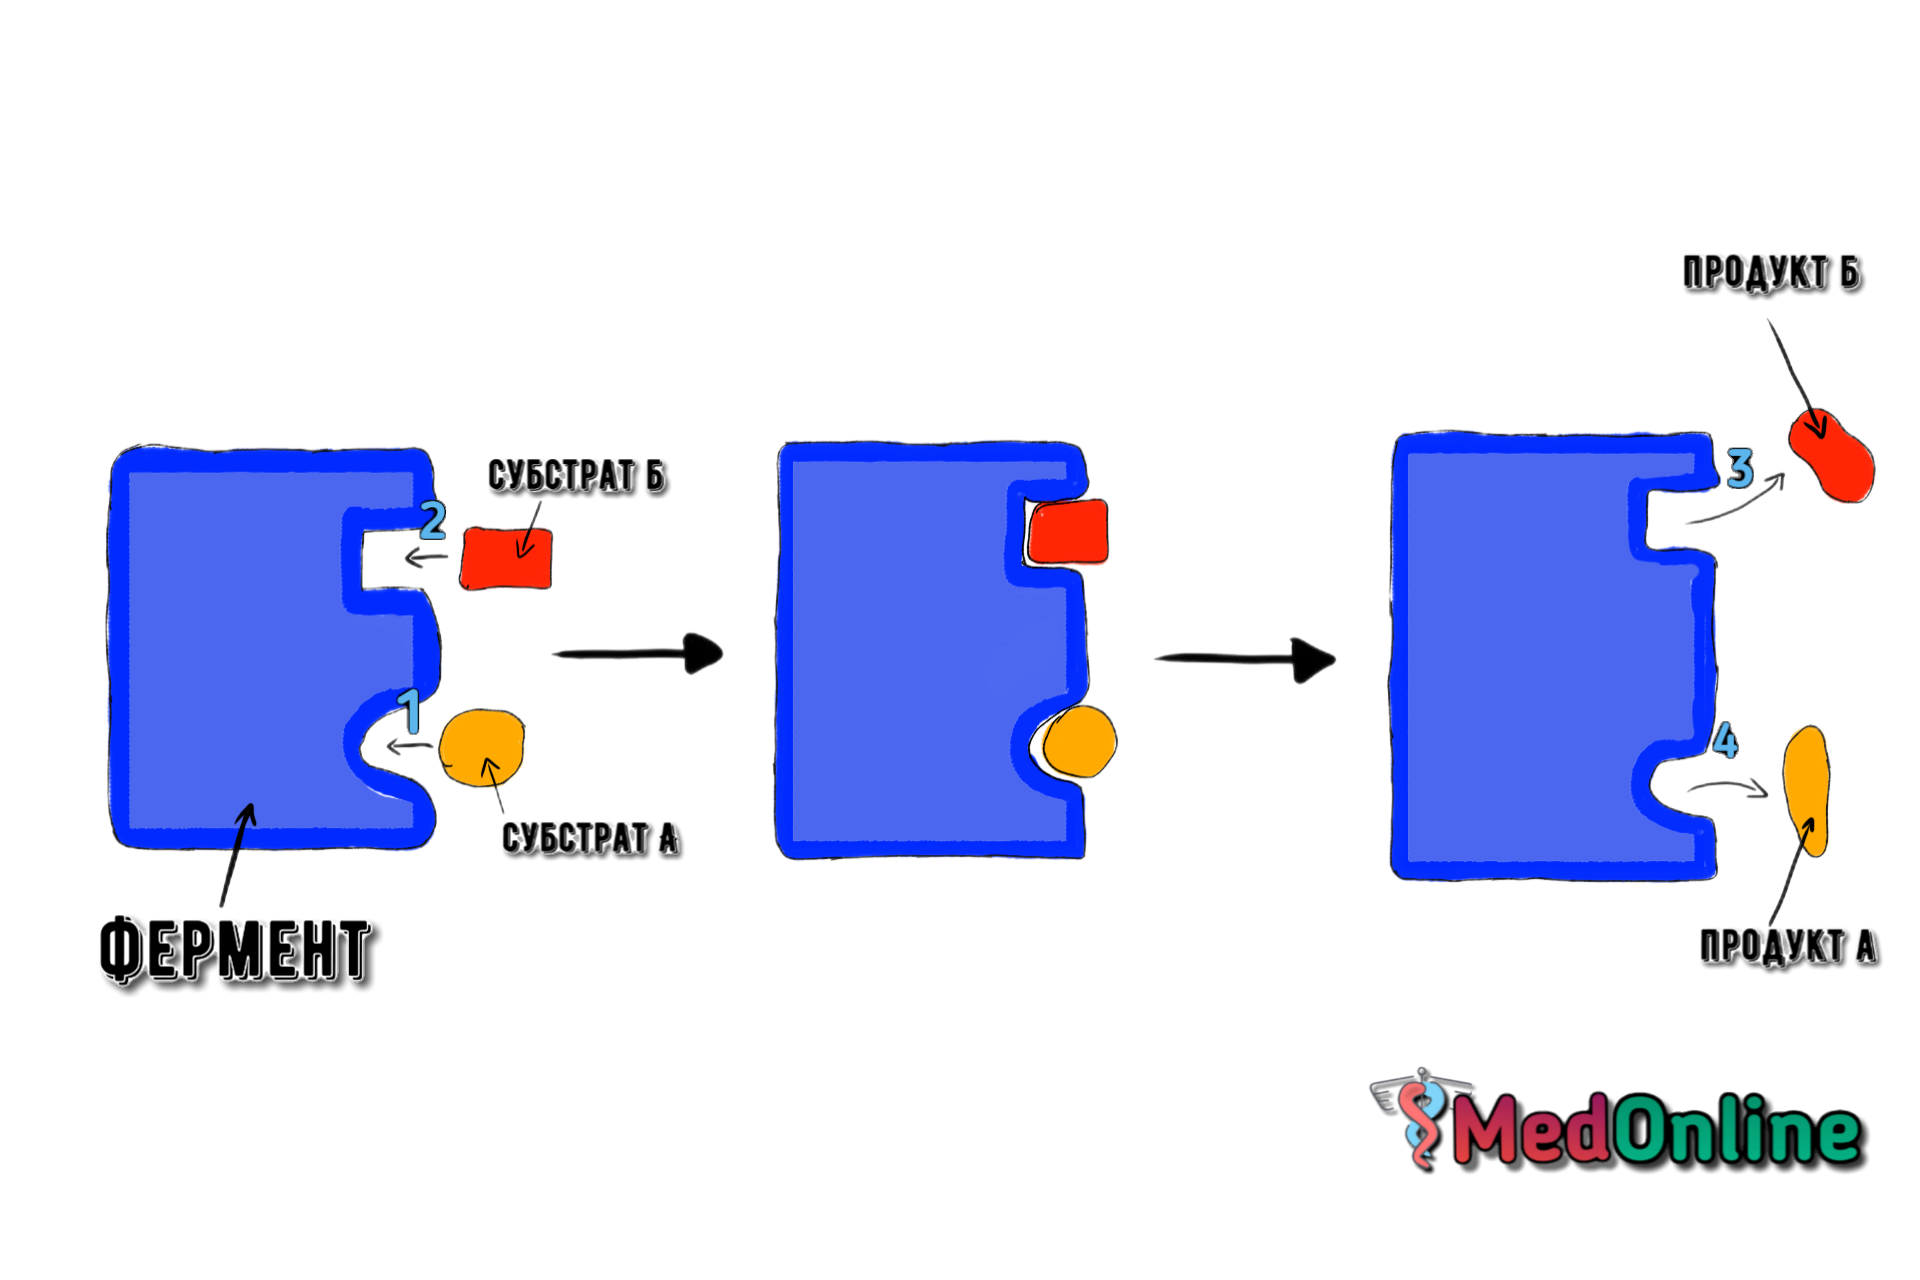
Тип послідовних реакцій: ми також маємо два субстрата та фермент.Субстрат А прикріплюється до ферменту, а за ним приєднується і субстрат Б, таким чином утворюється комплекс("потрійний комплекс" - фермент та два субстрата).Фермент каталізує реакцію між цими субстратами, в результаті чого утворюються два продукти реакції - продукт А та продукт Б, після чого вони послідовно відщеплюються від фермента.
Тип випадкової взаємодії: два субстрата та фермент.Але в цьому випадку немає чіткої послідовності в приєднані субстратів до ферменту: спочатку може приєднатись як субстрат А так і субстрат Б, вони провзаємодіють - утворяться продукти реакції, які також відщепляться від фермента в будь-якій послідовності.
Активність та кількість ферменту
Активність ферменту характеризує швидкість біохімічної реакції, яку каталізує певний фермент.
Є три одиниці вимірювання:
- Одиниця активності ферменту(U) - така кількість ферменту, яка каталізує перетворення 1мкмоля за 1 хв:
1 U = 1 мкмоль/хв
- Катал(кат) - кількість ферменту, яка каталізує перетворення 1 моля субстрату за 1 секунду:
1 кат = 1 моль/с - Питома активність ферменту - кількість одиниць активності фермента(див.вище) на 1мг білка в цьому біологічному об'єкті/середовищі(сеча, кров, лімфа, тощо):
U/мг білка
У медичній практиці активність фермента найчастіше виражають в одиницях(U) на 1 літр біологічної рідини(U/1л).
Властивості ферментів
Ферменти(біологічні каталізатори) трохи відрізняються від неорганічних каталізаторів, особливостями перших являються:
1.Специфічність ферментів пояснюється комплементарністю(строгою відповідністю) субстрата до активного центра фермента.Є декілька видів специфічності:
- Стереохімічна субстратна специфічність проявляється в тому, що фермент каталізує лише перетворення якогось певного стереоізомеру, наприклад: мальтоза розщеплює лише α1,4-глікозидний зв'язок, а не β1,4, або ж та сама гексокіназа каталізує реакцію тільки між D-моносахаридом(а не L-моносахаридом) та АТФ, так же само можна сказати і про L-амінокислоти, тощо.
- Абсолютна субстратна специфічність проявляється в тому, що фермент взаємодіє лише з однією речовиною, наприклад, каталаза розщеплює лише перекись водню, уреаза - сечовину, тощо
- Абсолютна групова субстратна специфічність проявляється в здатності фермента каталізувати перетворення якоїсь певної функціональної групи, наприклад, фермент алкогольдегідрогеназа каталізує перетворення лише -OH(гідроксильна) групи.
- Відносна групова субстратна специфічність проявляється в тому, що фермент розриває зв'язки між певною групою субстратів, наприклад, тромбін розриває зв'язки лише між аргініном і гліцином
- Відносна субстратна специфічність проявляється в тому, що фермент каталізує перетворення субстратів за якимись загальними ознаками, наприклад, в клітинах печінки, цитохром P450 каталізує перетворення гідрофобних речовин для подальшого виведення їх з сечею.
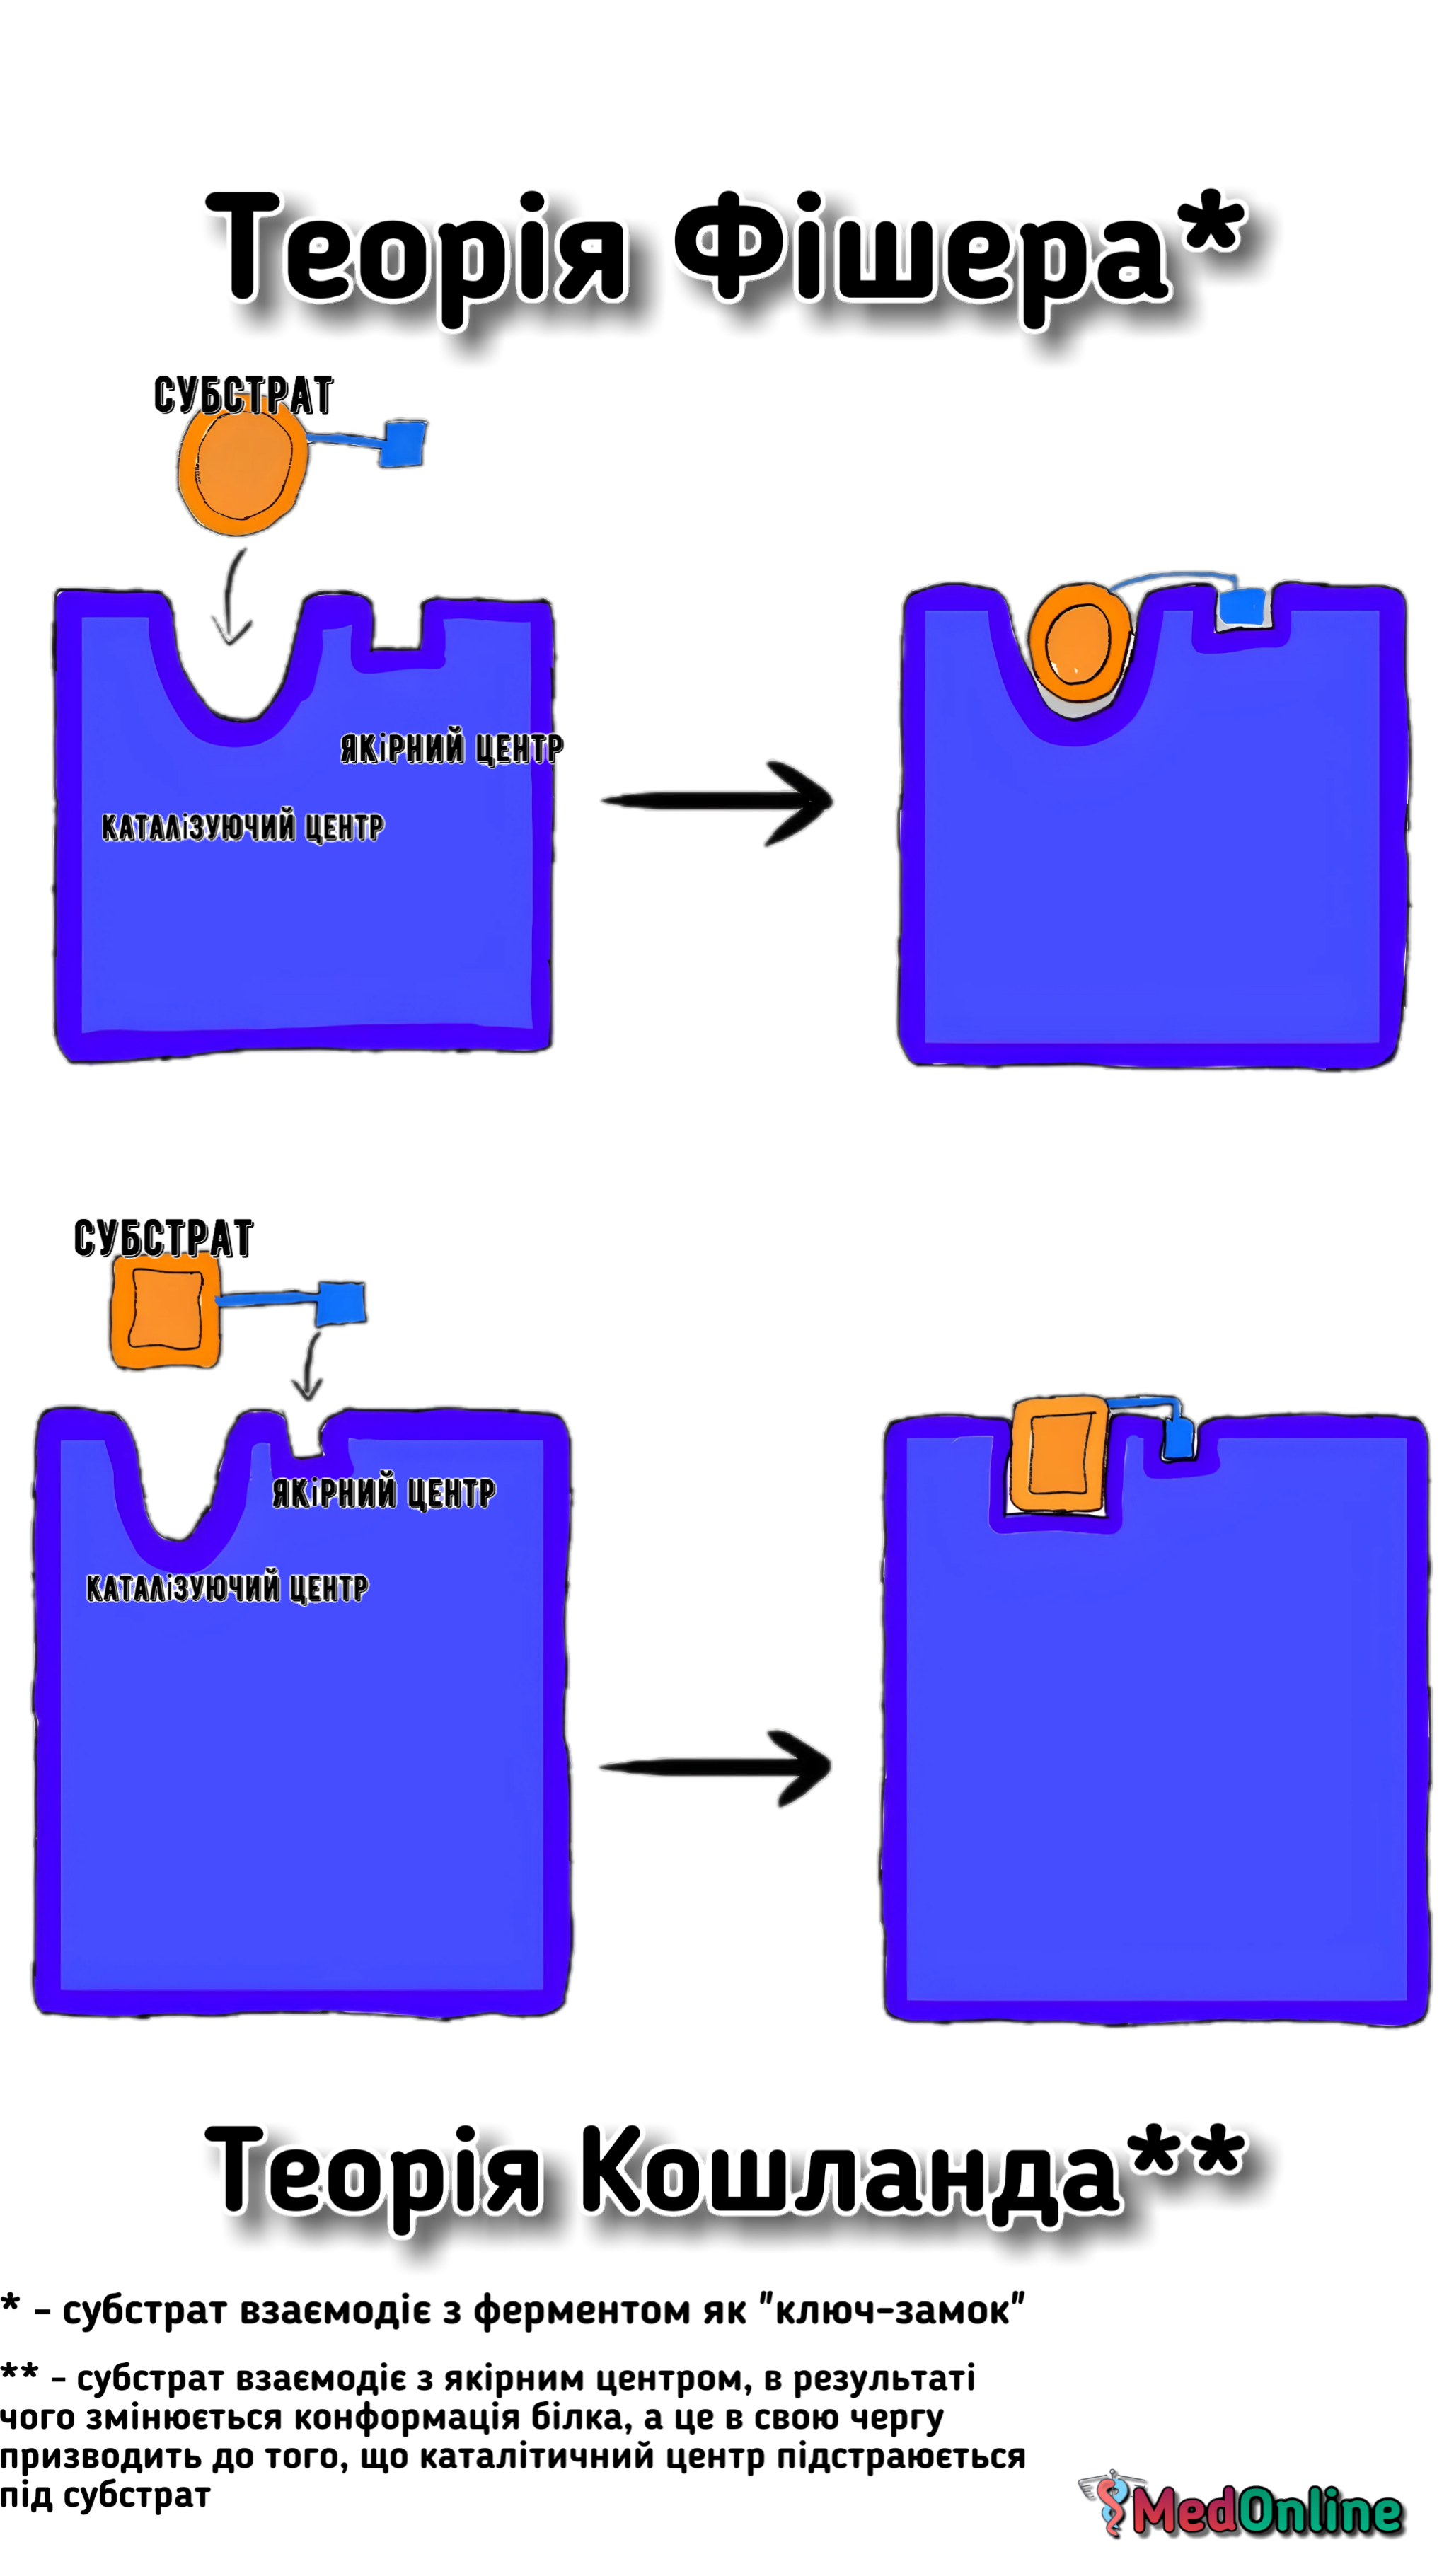
Однак, існують дві теорії: Фішера та Кошланда.
Теорія Фішера каже, що активний центр фермента чітко відповідає структурі субстрата, тобто, активний центр зв'язується з субстратом, як "ключ-замок", ця теорія пояснює абсолютну специфічність.
Теорія Кошланда гласить, що субстрат спочатку зв'язується з якірним центром, внаслідок чого каталітичний центр підстраюється під субстрат, можливо, це пояснює абсолютну групову специфічність.
2.Каталітична специфічність проявляється в тому, що фермент каталізує перетворення певного субстрата за певним напрямком(наприклад, гексокіназа каталізує перетворення глюкози в глюкозу-6-фосфат, і більше ніяк).Але це не означає, що у речовини лише одна "судьба", ні, наприклад, у глюкози-1-фосфат є декілька каталізаторів, які утворять різні продукти реакції: фосфоглюкомутаза(утворить глюкозу-6-фосфат), УДФ-глюкоза пірофосфорилаза(яка утворить УДФ-глюкозу).Тому, доля кожної молекули залежить від потреб клітини, внаслідок чого активується експресія різних ферментів.
3.Залежність від температури.Ферменти являються білками, а останні дуже чутливі до змін навколишнього середовища(температура, pH), так як при різних значеннях показників змінюється просторова структура(конформація) білка, що дуже сильно впливає на його функціональність.
Так ось, ферменти найкраще працюють при температурі в діапазоні 36-42 градусів по Цельсію.Але, якщо температура знаходиться в діапазоні 0-30 градусів по Цельсію, то при її збільшені - збільшується каталітична активність білка(наприклад, фермент більш активний при 25 градусах, ніж при 10).Але, як тільки температура стає більше 42 градусів - відбувається денатурація білка, тобто, наш фермент, який являється білком - руйнується, внаслідок чого зменшується як кількість ферменту так і його активність.
4.Залежність від pH.Тут уже немає чіткої закономірності, так як кожен фермент має своє чітко виражене значення pH, при якому його каталітична активність максимальна, наприклад, для пепсину це значення буде 1.5(кисле середовище), для трипсину, ліпази та амілази - 8(лужне), для ліпопротеїнліпази - 7.3(приблизно як pH крові).Це пояснюється тим, що при даному pH ферменти мають таку конформацію(просторове положення амінокислот в молекулі), яка забезпечує максимальну каталітичну активність.
Тепер швиденько пробігаємось.
5.Ферменти каталізують лише енергетично можливі реакції.Якщо ця реакція в природі не можлива, то яку кількість ферменту або іншого неорганічного каталізатора в це середовище не напхай - вона не відбудеться.
6.В результаті реакції, ферменти ніяк не змінюють свою структуру та кількість
Рівняння Міхаеліса-Ментена
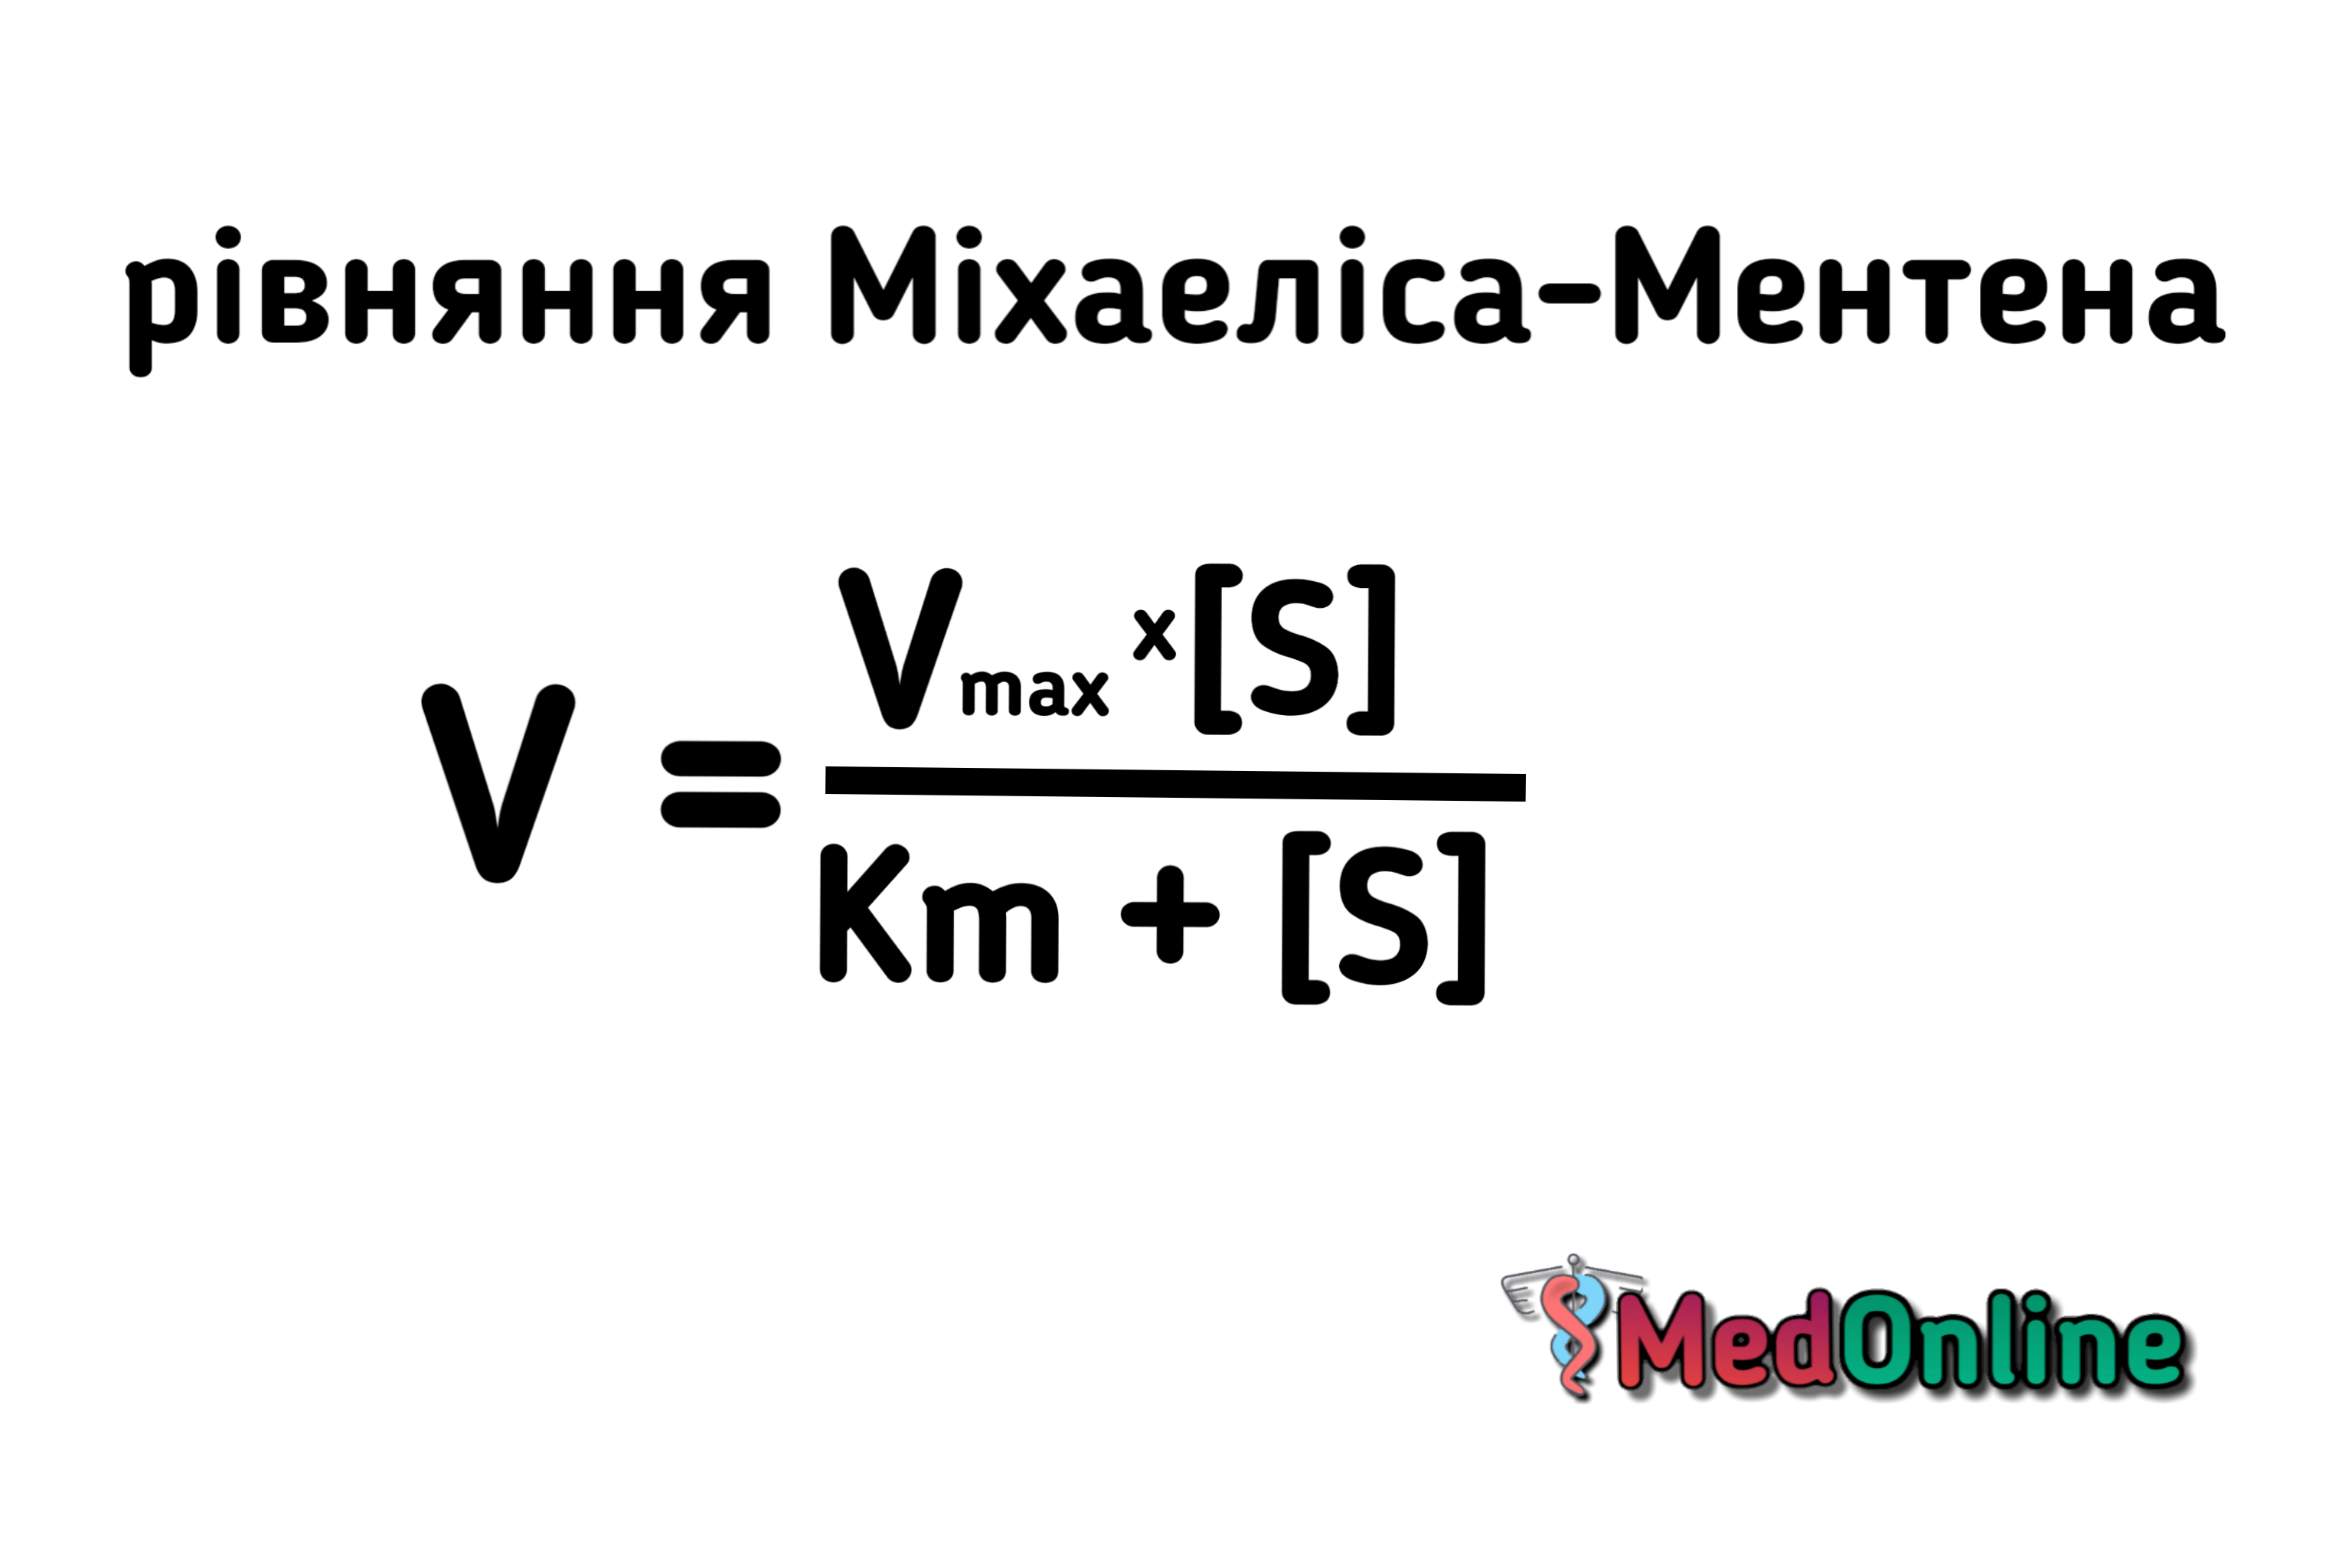
Km - константа Міхаеліса-Ментена, яка залежить від pH, тиску, температури.
[S] - концентрація субстрата.
V - швидкість каталізу.
Vmax - максимальна швидкість каталізу.
Взагалі, константа Міхаеліса дорівнює такій концентрації субстрату, при якій швидкість каталізу дорівнює половині максимальній.
Чим більше це значення, тим спорідненість фермента до субстрата менша, і навпаки, чим менше - тим спорідненість вища.
Це не зовсім так і важливо, якщо ви не працюєте в якійсь біохімічній лабораторії, найголовніше запам'ятати, що константа Міхаеліса показує спорідненість ферменту до субстрату, так як "Km" буде зустрічатись доволі часто.
